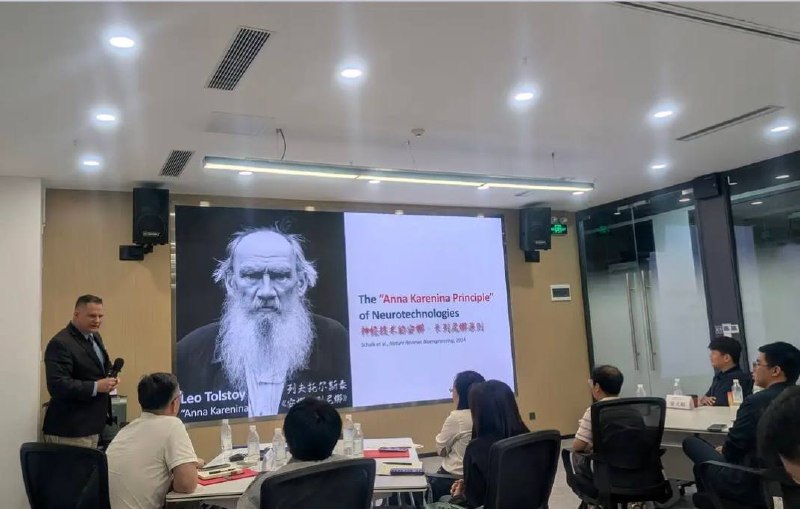
Гервин Шолк применяет «принцип Анны Карениной» к разработке и внедрению систем интерфейсов мозг-компьютер.
Этот принцип, отсылающий к цитате из романа Льва Толстого «Все счастливые семьи похожи друг на друга, каждая несчастливая семья несчастлива по-своему», в научном контексте означает, что успех сложной системы возможен только при совпадении множества факторов, тогда как сбой в одном из них обрекает весь проект на неудачу.
Эту концепцию исследователь описывает в статье “A Paradigm Shift in Translational Brain-Computer Interfaces” в журнале Journal of NeuroEngineering and Rehabilitation.
Шолк пишет:
«Интерфейсы мозг-компьютер подчиняются принципу Анны Карениной. Успешная трансляция ИМК-системы из лаборатории в реальную практику требует, чтобы каждый отдельный элемент — от качества регистрации сигналов и алгоритмов обработки до дизайна пользовательского интерфейса и обучения пациента — функционировал безупречно. Если сбоит хотя бы один компонент, вся система становится неэффективной».
Применительно к нейротехнологиям это означает необходимость оптимизации каждого этапа конвейера: сбора сигналов, предварительной обработки данных, извлечения признаков и классификации паттернов активности мозга. Дефект в любом компоненте резко снижает эффективность всей системы.
В работе, посвященной стандартизации ПО в контексте платформы BCI2000, Шолк отмечает, что исследователи часто концентрируются лишь на одном аспекте, например, на алгоритме классификации. Однако, по его словам,
«разработка успешного ИМК — это не поиск одной серебряной пули, а создание непрерывной и устойчивой технологической цепочки. Ошибка в препроцессинге или топологии электродов полностью нивелирует любые преимущества самого мощного математического алгоритма».
Концепция вращательной динамики (rotational dynamics), была сформулирована Марком Черчлендом, Кришной Шеноем и их коллегами (Churchland et al., 2012).
Этот подход не следует путать с физической реальностью. Вращательная динамика не описывает вращения нейрональной активности на поверхности мозга, хотя может и проявляться в этом случае.
Метод Черчленда использует сугубо абстрактные математические координаты низкоразмерного латентного пространства (полученного методами снижения размерности, такими как jPCA). Эта виртуальная геометрия не имеет прямого отношения к реальным пространственным вращающимся или бегущим волнам, физически перемещающимся по поверхности коры головного мозга.
В нейрофизиологии метод Черчленда обрел дикую популярность, и, казалось бы, подобного рода статьи должны были начать плодиться в смежных областях, а именно в эпилептологии. Однако по эпилепсии таких статей не густо.
Изначально подход Черчленда разрабатывался для расшифровки работы моторной коры при планировании и выполнении движений. Вместо анализа спайковой активности отдельных нейронов авторы предложили проецировать массивы данных в фазовое пространство состояний, где коллективная популяционная активность выстраивается в упорядоченные вращательные траектории.
Схожая (с натяжкой) логика пространства состояний была таки применена к эпилепсии: переход мозга от нормальной активности к приступу можно описать как смену динамических режимов (Truccolo et al., 2011). В момент зарождения и развития приступа многомерная активность коры переходит в жестко детерминированные петли, которые исследователи интерпретируют как стабильный динамический аттрактор (Jiruska et al., 2013).
Подчеркнем еще раз, что в то время как реальная физика приступа часто представляет собой бегущие волны, мигрирующие по анатомическому пространству коры (Martinet et al., 2017; Lebedev et al., 2019), работы на базе метода Черчленда полностью абстрагируются от физических координат. Они концентрируются исключительно на геометрии нейронных состояний.
Имеет некоторый смысл описывать эпилептическую активность как бегущую волну (Lopes da Silva).
В период до приступа, то есть в преиктальной фазе, мозг часто демонстрирует постепенную пространственно-временную синхронизацию нейронов. Этот процесс можно представить как зарождение слабых ритмических колебаний, которые начинают распространяться от локального источника. В этот момент волна еще не разрушает нормальную работу мозга, но подготавливает почву, постепенно вовлекая в патологический ритм все новые и новые ансамбли клеток (Martinet).
Исследователи фиксируют этот паттерн с помощью многоканальной электроэнцефалографии, отслеживая фазовые сдвиги, которые как раз и выглядят как движение фронта волны по коре.
В момент самого приступа, в иктальной фазе, бегущая волна становится еще более очевидной. Эпилептический разряд представляет собой волну деполяризации, которая физически перемещается по нервной ткани (Smith). Нейроны поочередно переходят в состояние гиперактивации, передавая этот импульс соседним участкам.
Ярким клиническим примером такого процесса является джексоновский марш при фокальных моторных приступах, когда судороги последовательно переходят, например, от пальцев рук к кисти, предплечью и лицу. Это прямое отражение того, как волна возбуждения буквально бежит по двигательной коре головного мозга согласно ее соматотопической карте (Jackson).
Математическое и компьютерное моделирование активности мозга также во многом опирается на уравнения реактивно-диффузионного типа, которые описывают именно волновые процессы в неоднородных средах (Jirsa).
Трактовка эпилепсии через призму бегущих волн дает ученым кусок хлеба. Они утверждают, что выписывая формулы, смогут понять, почему приступ в какой-то момент затухает или, наоборот, генерализуется на оба полушария.
Далее бла-бла-бла, типа: это знание критически важно для разработки современных методов лечения, например, для точечного программирования нейростимуляторов, которые должны посылать импульс на опережение, чтобы перехватить и погасить эту патологическую волну до того, как она охватит весь мозг (Santos).
Литература
Lopes da Silva 2003 Handbook of Clinical Neurophysiology
Martinet 2017 The Journal of Neuroscience
Smith 2016 Brain
Jackson 1870 Transactions of the St. Andrews Medical Graduates' Association
Jirsa 2014 Frontiers in Computational Neuroscience
Распространение эпилептической активности из первичного очага существенно различается в приступном и межприступном периодах.
Здесь решающую роль играет способность синаптических сетей мозга сдерживать патологическую синхронизацию (Jefferys).
В межприступном периоде локальная эпилептиформная активность клинически проявляется в виде изолированных спайков, острых волн или комплексов спайк-волна.
В это время патологический разряд удерживается в пределах эпилептогенной зоны благодаря механизмам окружающего торможения (Prince). Популяция ГАМК-ергических интернейронов гиперполяризационный барьер вокруг гиперактивного пула нейронов очага (Trevelyan). Это заграждение препятствует вовлечению соседних интактных структур, из-за чего эпилептическая активность угасает, не перерастая в полноценный приступ.
Во время развития судорог, то есть в иктальном периоде, происходит срыв этих защитных барьеров. Главным фактором становится истощение ГАМК-ергического торможения и прогрессирующий деполяризационный сдвиг мембранного потенциала (Dingledine et al.).
Избыточное высвобождение глутамата активирует NMDA- и AMPA-рецепторы, что приводит к массивному входу ионов кальция и натрия внутрь клеток. В результате вал окружающего торможения прорывается, и гиперсинхронный разряд начинает вовлекать новые нейрональные популяции (Trevelyan et al.).
Распространение возбуждения осуществляется по двум механизмам.
Первичное распространение происходит по локальным сетям за счет латерального вовлечения соседних корковых колонок посредством коротких внутрикорковых связей (Chagnac-Amitai).
Вторичное распространение идет по проекционным путям. Эпилептическая активность задействует длинные ассоциативные и комиссуральные волокна, что позволяет разряду перемещаться в гомотопичные области противоположного полушария через мозолистое тело (Mutani).
Критическую роль в генерализации судорог играют подкорковые структуры, особенно таламус и базальные ганглии. При вовлечении кортико-таламо-кортикальных петель происходит взаимное резонансное усиление разрядов (Blumenfeld). Таламус начинает функционировать как синхронизатор, который быстро и диффузно распределяет патологическую активность по всей коре больших полушарий (Guye et al.). Этот процесс вовлечения широких нейрональных сетей приводит к трансформации фокального приступа во вторично-генерализованный судорожный приступ, охватывающий весь головной мозг (Spencer).
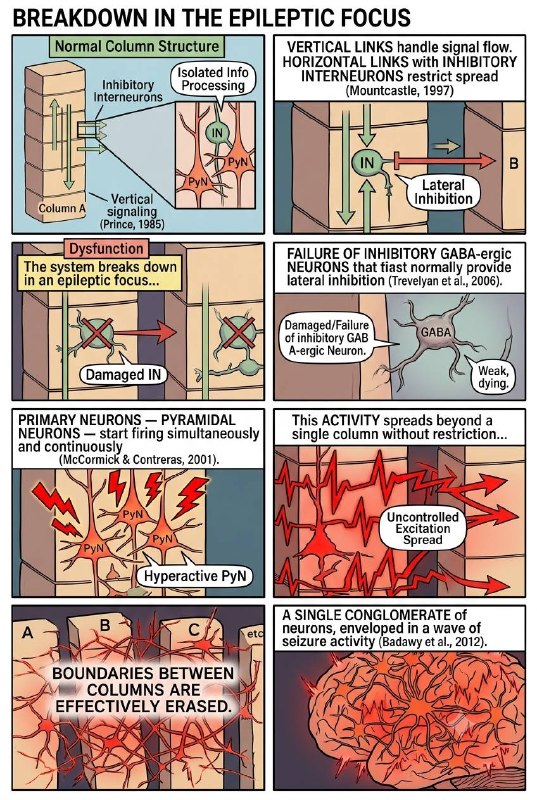
В эпилептическом очаге привычная функциональная структура кортикальных колонок претерпевает серьезные изменения (Prince, 1985).
В норме кортикальная колонка работает как относительно изолированная единица переработки информации. Вертикальные связи между слоями коры обеспечивают прохождение сигнала внутри нее, а горизонтальные связи, задействующие тормозные интернейроны, ограничивают распространение возбуждения на соседние участки (Mountcastle, 1997).
При формировании эпилептического очага эта система ломается из-за Нарушения функций тормозных ГАМК-эргических нейронов, которые в норме обеспечивают боковое торможение (Trevelyan et al., 2006).
Главные клетки колонки — пирамидальные нейроны — начинают разряжаться одновременно и непрерывно (McCormick and Contreras, 2001). В них возникает так называемый пароксизмальный деполяризационный сдвиг, заставляющий всю группу клеток генерировать мощные разряды. Эта активность начинает беспрепятственно выходить за пределы одной колонки. Возбуждение передается по горизонтальным связям на соседние микроструктуры, вовлекая их в общий патологический ритм.
В результате границы между отдельными кортикальными колонками фактически стираются. Вместо мозаичной и упорядоченной работы коры формируется единый конгломерат нейронов, охваченный волной судорожной активности (Badawy et al., 2012).
Список литературы
Prince 1985 Annual Review of Neuroscience
Mountcastle 1997 Brain
Trevelyan, Sussillo, Watson, Yuste 2006 Journal of Neuroscience
McCormick, Contreras 2001 Annual Review of Physiology